
淀粉是主要能量来源和重要食品原料,但天然淀粉不溶于冷水、易回生老化,严重制约其在功能性食品和精细化工等领域的应用。为了突破天然淀粉的性能瓶颈,科学家们发展了多种改性手段,包括物理改性、化学改性和酶法改性。其中,酶法改性凭借其绿色、高效、精准的优势,被认为是淀粉改性领域最具前景的方向之一。其中α-葡聚糖分支酶(GBE)可水解α-1,4-糖苷键并将切下链段以α-1,6-糖苷键重新连接,从而增加分支密度,调控糊化、抗老化和消化等性能。然而,传统分支酶改性依赖体外酶法路线,涉及微生物发酵生产、酶纯化和离体催化等环节,存在成本高、效率低、产物均一性差等瓶颈,限制其工业化推广。
面对体外酶法改性淀粉困境,近日Plant Biotechnology Journal杂志在线发表了浙江大学包劲松教授团队的研究论文“In Planta Expression of Thermophilic GtGBE Mimics BEIIb and Modifies Rice Starch Structure Without Yield Penalties”。研究提出了一种全新的思路,将微生物来源的分支酶直接在水稻体内表达,让植物自身完成淀粉的“体内改性” 。这一策略的核心优势在于:绕过昂贵的酶纯化步骤;酶在淀粉合成位点原位发挥作用,底物可及性更佳;具备可规模化、低成本生产改性淀粉的潜力。
1.让水稻自身完成淀粉的“体内改性”
嗜热葡糖苷芽孢杆菌 Geobacillus thermoglucosidans STB02存在一个α-葡聚糖分支酶(GtGBE),该酶的最适工作温度约为50°C,具有良好的热稳定性和催化活性。研究团队根据GtGBE基因序列合成适合植物表达的基因。首先,研究团队在体外验证了GtGBE的催化功能。重组表达的GtGBE在50°C下处理水稻淀粉36小时后,淀粉的碘结合能力显著下降,SEC和FACE分析表明短链(DP 6–26)比例明显增加,而中长链(DP > 27)相应减少,直链淀粉的长链也被优先切割。这些结果确认了GtGBE具备典型的分支酶活性,能够有效重塑淀粉结构,为后续的体内表达策略提供了实验依据。随后,构建了两种转基因载体:一种使用胚乳特异性水稻淀粉分支酶IIb(BEIIb)启动子(pBEIIb) ,让GtGBE只在稻米胚乳中表达;另一种使用组成型玉米Ubiquitin启动子(pUbi) ,让GtGBE在水稻各组织中持续表达。发现两种启动子驱动下的GtGBE表达,产生了截然不同的淀粉分支模式。pBEIIb‑GtGBE呈现BEI缺失样特征(DP ≤12和DP 24–35增加,DP 13–23和DP 36–51减少),而pUbi‑GtGBE呈现BEIIb样特征(DP ≤16广泛增加,DP ≥17减少)。这表明GtGBE具有BEIIb样分支活性,但启动子选择决定了最终的CLD谱型。
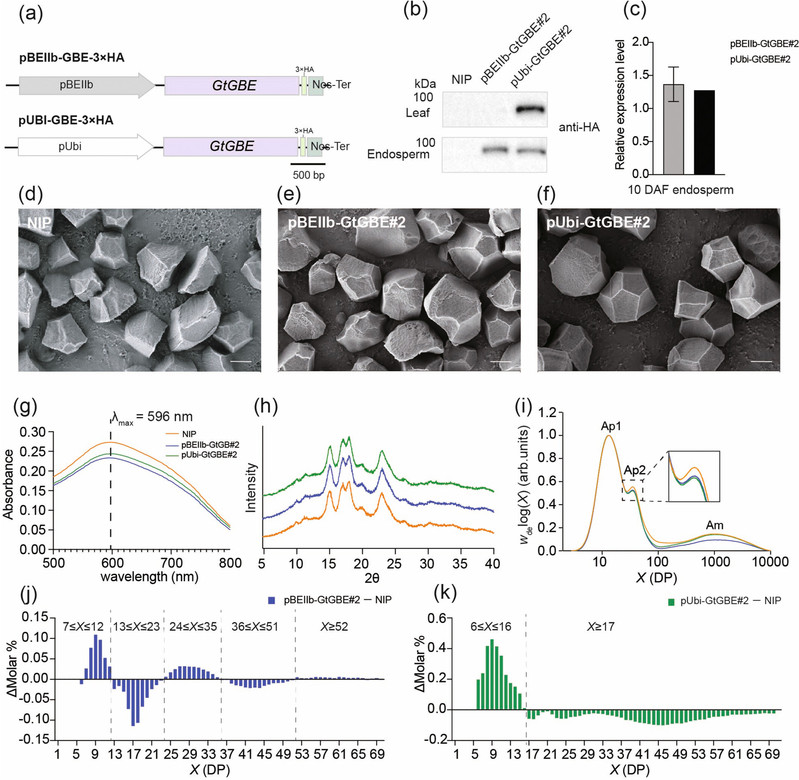
图1. 两种启动子驱动的GtGBE体内表达产生不同淀粉分支模式
2.GtGBE分支模式的启动子依赖性调控机制——基于CLD数学模型拟合与分支酶表达分析
为了深入理解两种启动子驱动下淀粉结构差异的分子机制,研究团队对链长分布(CLD)进行了数学模型拟合分析,并整合了分支酶表达数据。在pBEIIb-GtGBE株系中,GtGBE表达水平较低,同时内源分支酶BEI在花后10天和15天被显著下调。BEI已知优先转移较长链,其活性降低限制了长链的剪切。CLD拟合进一步显示分支酶的底物偏好发生了改变。最终,该株系呈现类似be1缺失突变体的链长分布特征,短链比例增加且倾向于更长。在pUbi-GtGBE株系中,GtGBE蛋白在三个检测时间点均持续高积累,同时内源BEIIb在花后15天显著上调,协同增强了短链的生成,使短链区域产生了更多更短的链,与ae突变体(BEIIb功能缺失)的模式恰好相反。值得一提的是,GtGBE未引发植物糖原异常积累,这得益于其嗜热特性—最适温度(约50 ℃)远高于水稻生长温度(21-29 ℃),其体内催化效率天然受限。
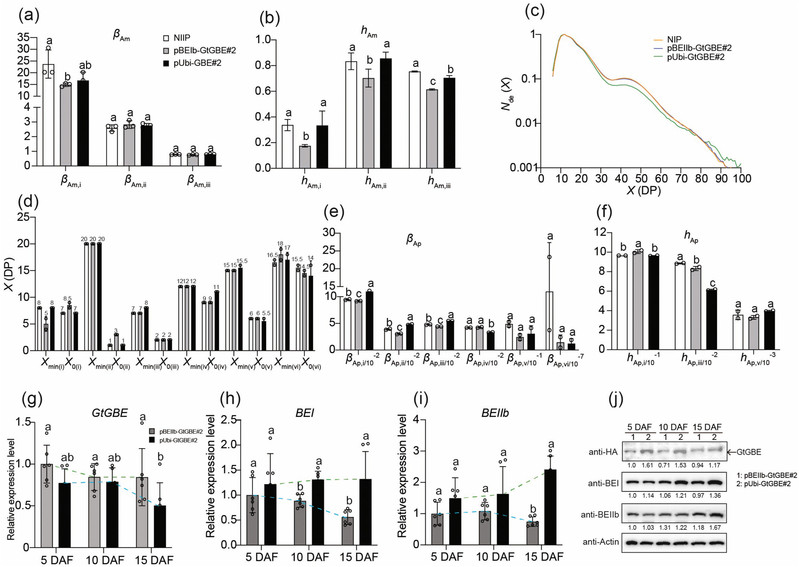
图2.基于CLD数学模型拟合与分支酶表达分析揭示不同启动子驱动GtGBE淀粉分支
3.从结构到功能,改性淀粉功能发生了哪些变化?
GtGBE介导的淀粉结构重塑带来了多项功能改善:
(1)结晶结构:相对结晶度显著降低,但A型结晶模式保持不变,碘结合能力下降证实了直链淀粉减少和分支度提升。
(2)热力学特性:糊化温度降低约1°C,pBEIIb株系起始糊化温度最低,pUbi株系峰值和终止糊化温度最低,有助于节省加工能耗。
(3)抗回生性:回生焓、回生率和抗性淀粉含量均显著降低,有利于延长食品货架期。
(4)流变特性:pUbi-GtGBE淀粉凝胶具有更高的储存模量和机械强度,同时表现出更高的黏度和剪切敏感性,在食品储存稳定性和口感改良方面具有应用价值。
(5)环境依赖性:GtGBE改性效果受环境温度影响显著。在杭州夏季高温胁迫条件下(平均23–29°C,峰值>35°C),pUbi启动子驱动的GtGBE功能受到严重削弱,而pBEIIb启动子表达更为稳定,为后续育种和种植策略提供了重要参考。
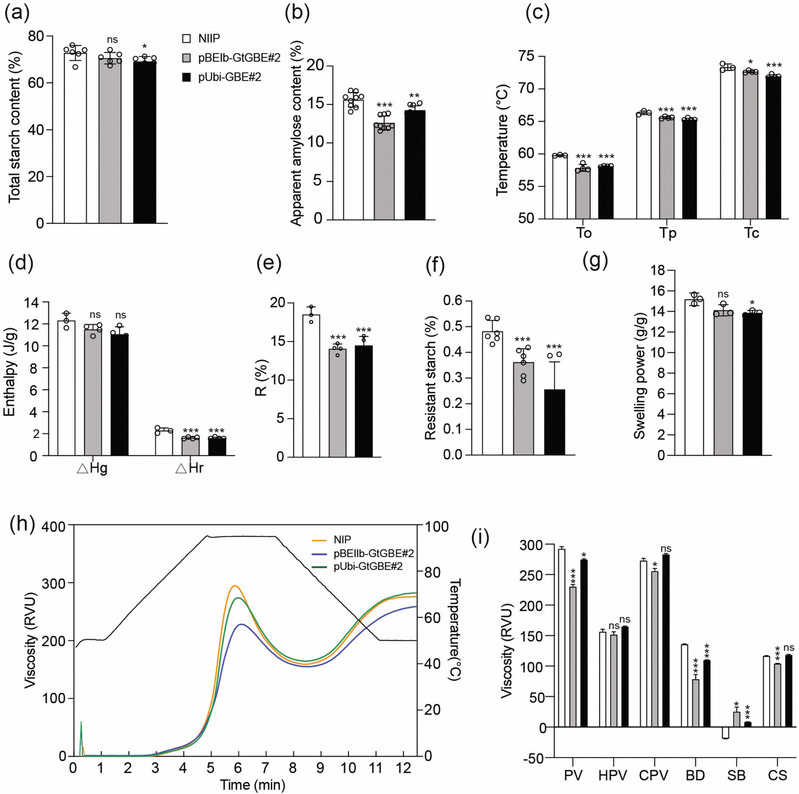
图3. GtGBE改变了淀粉的糊化特性和热力学特性
4.GtGBE体内表达改性淀粉结构但不影响产量
淀粉合成途径的基因突变往往伴随着产量损失的副作用。例如,水稻BEIIb功能缺失的ae突变体虽然改变了淀粉结构,但千粒重减少了约35%。BEIIb过表达则导致植物糖原异常积累。然而,本研究中的GtGBE转基因株系完全打破了这一“魔咒” 。在海南三亚种植条件下,pUbi-GtGBE株系的千粒重显著增加,同时籽粒长度也有所增加。在杭州种植条件下,pUbi-GtGBE株系的每穗饱粒数显著增加,而结实率未受影响。两种启动子的转基因株系在株高、穗长、剑叶长度和宽度等农艺性状上与野生型均无显著差异。以上结果表明,GtGBE作为一种“温和而有效” 的分支工具,能够在成功修饰淀粉结构的同时,避免因内源淀粉生物合成失调而导致的严重产量损失。这一特性使其在农业应用上具有独特的优势。
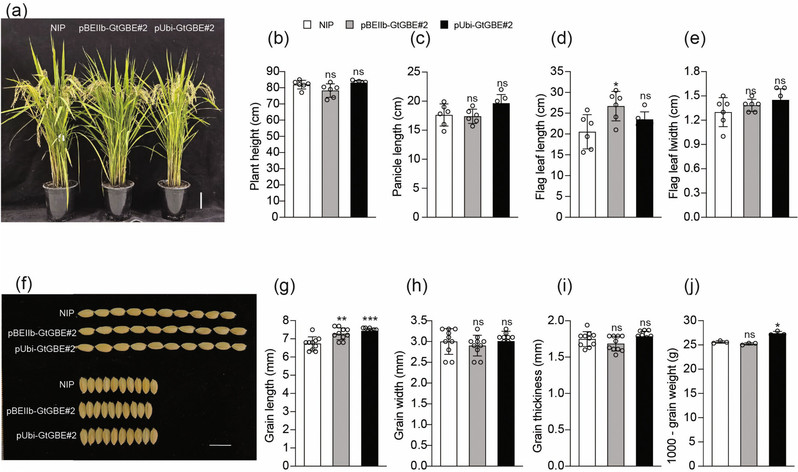
图4.GtGBE表达对农艺性状和产量性状无显著负面影响
5.展望:从“体外加工”到“体内智造”
本研究系统验证了“植物体内直接改造淀粉结构”的可行性。从体外酶法到体内智造,这一转变让植物成为自己的“生物反应器”。通过引入嗜热分支酶GtGBE,研究团队成功实现了水稻淀粉的定向修饰,增加短支链淀粉,减少直链淀粉和长链,同时规避了体外酶法的高昂成本和内源淀粉合成紊乱带来的产量损失。CLD拟合分析揭示了启动子依赖性的双重机制:pBEIIb通过下调BEI模拟了BEI缺失表型,pUbi则通过GtGBE高积累和BEIIb上调增强了BEIIb样活性。这一策略为功能性淀粉的绿色生产和“设计型”谷物开发提供了新路径。当然,从实验室到田间仍有很长的路要走,但本研究已为淀粉的“体内智造”打开了新的大门。
浙江大学徐非非特聘副研究员为论文第一作者,包劲松教授为通讯作者。已毕业硕士研究生潘建名,在读研究生李萌、李新宇、常佳媛、傅文佳和顾楷文等参与了该项研究。本项目研究获得了浙江省自然科学基金和海南省自然科学基金项目资助。
论文链接
https://onlinelibrary.wiley.com/doi/10.1111/pbi.70744